所謂「冷門細胞器」,要麼是指沒什麼人研究的——既然沒什麼人研究,那通常也不會有趣,這樣一問,問題本身就自相矛盾了。
所以換個讀法:新發現的、功能很重要的,甚至定義和存在性都還有爭議的,而且研究得很不全面的,大概就是這個意思。
然而,隨著人們在細胞內發現越來越多複雜機器、對它們的認識也不斷加深,細胞器(organelles)這個概念正在被拆解。
一般說細胞器分「膜性細胞器」和「無膜細胞器」,比如內質網、高爾基體,與核糖體、中心體、剪接體,好像兩邊的界線涇渭分明。
一些偏冷門的膜性細胞器包括:自噬體(autophagosome,而且有雙層膜)、過氧化物酶體(peroxisome)等等;此外,外泌體(exosome),以及前幾年俞立等發現的遷移體(migrasome),也被標記為一種細胞器,其功能可能是細胞排出廢物的機制,例如清除受損的粒線體。
但現在,大型分子複合物(macromolecular complex)和相分離(phase separation),讓我們對細胞器的認識越來越改變,出現了一些很不尋常的趨勢。
一方面,這些分子機器與細胞器之間總是相互串擾,構成一張高度動態的巨大網絡;有些複合物根本沒有完整的形態(無法界定出一個代表它完整形態的分子組成),只能稱為分子平台(platform)或分子通路(pathway)。
另一方面,(液-液)相分離(LLPS)提供了不同於膜的分隔機制,甚至是區室機制,其中一些蛋白或 lncRNA 就充當區室結構的邊界支架。
此外,研究發現核糖體、內質網、高爾基體等細胞器的發生與形成,也依賴相分離過程。
還有幾點值得注意。
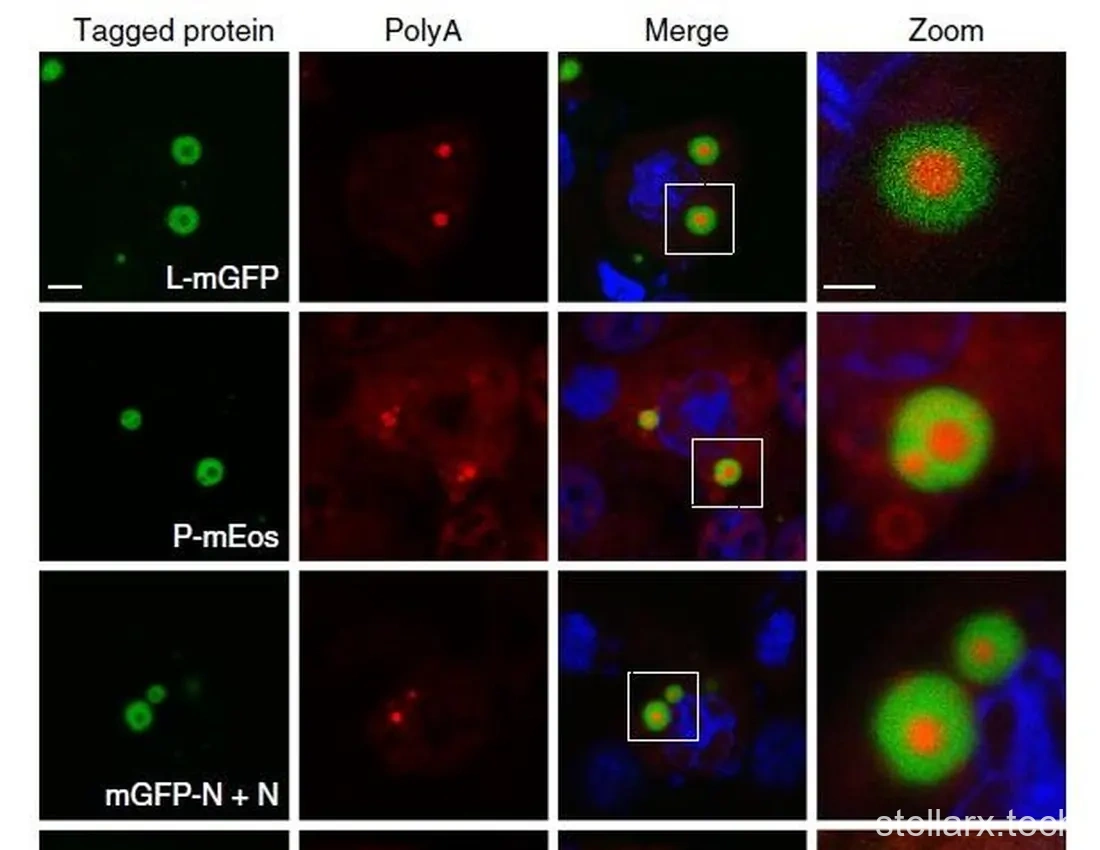
有些相分離液滴甚至具有複雜結構。比如呼吸道融合病毒(respiratory syncytial virus, RSV)的包涵體(inclusion bodies, IBs),病毒 RNA 在其中複製時又形成包涵體相關顆粒(IBAGs),結果包涵體看起來竟然活像一個細胞(Nature Communications, 2017)。
細胞器的膜也是半透膜或條件透過膜,上面有各種孔蛋白控制物質進出。例如內質網膜上的 Sel1L-Hrd1 複合物(Trends in Biochemical Sciences, 2018)、過氧化物酶體上的 Pex13-Pex5(Science, 2022)、粒線體外膜的 Tom40-Tom20/22、粒線體內膜的 Tim23/17-Tim44、溶酶體膜的 LAMP2a 等,可以對蛋白等大分子進行跨膜運輸(但貨物在運輸時結構已被破壞或不完整);而核膜上的核孔複合體(NPC)則可以完整地運輸。也就是說,分隔程度與透過性只有大與小的差別,而不是有與無的差別。
膜性細胞器的膜(注意是它們的膜,而不是其他組分)並非從頭發生,而是要麼依賴核—內質網—高爾基體—質膜這條主軸膜系統,要麼靠同類細胞器分裂繁殖或其他形式的自我複製而形成。真核細胞是否具有從頭組裝出有功能的閉合膜腔的能力,現在仍存疑。
把上面這些情況合起來,就形成了一座從簡單大分子到複雜典型細胞器的金字塔,每個層次都發揮著自己獨特而重要的功能。
與此相比,現今某些學者或報導,鑑定出新型囊泡、大液滴或蛋白機器,就高興地直呼自己「發現了一種新的細胞器」——這種做法其實頗令人覺得畫風詭異。
好,說完了上面這些,現在姑且舉幾個「冷門細胞器」的例子。
遷移體:留在遷移尾跡上的石榴
應讀者要求加上遷移體。顧名思義,它就是遷移中的細胞產生、並遺留在自己遷移尾跡上的「石榴樣」囊泡性細胞器(FEBS Journal, 2022)。
目前已鑑定出,四跨膜蛋白 tetraspanin(Tspan)家族成員,如 Tspan4 富集於遷移體中,可以作為標誌物,也是遷移體發生機制的中心角色。之後又鑑定出更多標誌物,如 NDST1、PIGK、CPQ、EOGT、整合素、WGA(小麥胚芽凝集素,含 N-乙醯-D-葡萄糖胺與 N-乙醯神經氨酸)等。Tspan4 或其他 Tspans 傾向在尾跡上某些位置富集並鼓起,而「某些位置」似乎取決於幾種整合素 integrin 如 α1 與 α5,以及它們在細胞外基質(ECM)中特定配體的分布特徵(還有待進一步釐清)。
有意思的是,即使離細胞主體很遠,遷移體仍透過收縮纖維(retraction fibers, RFs)相連;另外,脫離的遷移體也不等同於外泌體——與外泌體相比差別很大,只能歸為另一種特殊的外膜囊泡。
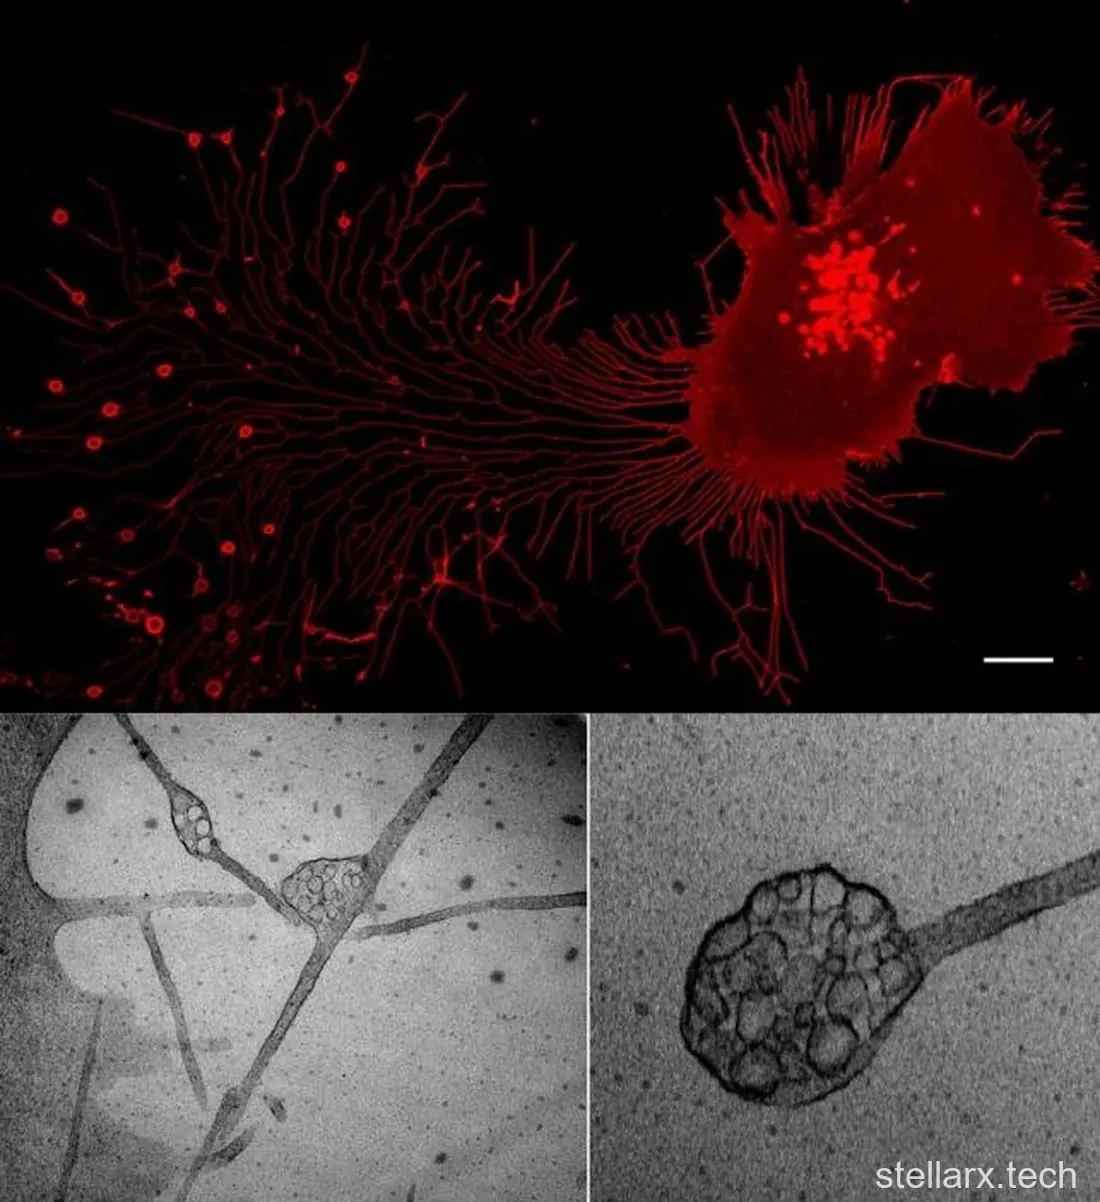
圍繞遷移體的生物學功能,目前提出三個模型,各有證據與案例,更多功能與機制仍待發掘。
包裝資訊,向周圍細胞傳遞訊號。 例如富集大量細胞激素、趨化激素、生長因子,並在遷移體所在位置緩慢持續釋放,而不是一次性大量釋放。
垃圾處理機制。 例如發現一種稱為粒線體胞吐(mitocytosis)的機制:細胞把受損粒線體分選進入遷移體。其分選機制似乎與受損粒線體無法結合動力蛋白 dynein、反而去結合驅動蛋白 kinesin I 有關,導致受損粒線體被運送到細胞邊緣區,並由肌球蛋白 myosin19 錨定於質膜上(myosin19 又結合於細胞皮質肌動蛋白),最後被封裝進遷移體。粒線體胞吐只在輕度粒線體壓力時發生(嚴重壓力會引起細胞死亡)。受損粒線體透過遷移體外拋的實際數量小、速度慢,代表一種粒線體品質管控機制,可能與粒線體自噬(mitophagy)協同作用。中性粒細胞是粒線體胞吐活躍的細胞之一,其分泌的遷移體中含受損粒線體;敲除 Tspan9 的小鼠,循環中粒細胞的存活率與粒線體膜電位嚴重下降。有意思的是,細胞移動本身相當耗能,會引起輕度粒線體壓力——所以遷移體的出現,時機恰好得宜。
功能分子的水平轉移(透過靶細胞內吞遷移體)。 例如把含 Pten mRNA 的遷移體加入腫瘤細胞株共培養,腫瘤細胞中便出現 Pten 蛋白合成;Pten 幾乎完全阻斷 P-Akt 訊號,並抑制腫瘤細胞增殖。不過目前仍不清楚,被內吞的遷移體如何躲過被溶酶體降解的命運。
遷移體是新近發現的細胞器,其發現是本國科學家近年標誌性的原創科研成果。不過相關研究需要時間沉澱,也該鼓勵那些有興趣卻仍抱持懷疑的人:跟從他人建立的隊列,並不無趣,也不可恥。
PML 小體:每個細胞核裡五到三十顆點
PML 是「原髓細胞性白血病」(promyelocytic leukemia)的意思。PML 小體又稱 ND10(ND: nuclear domain)、Kremer 小體,有時乾脆簡稱核小體(nuclear bodies),縮寫 PML-NBs。
它位於細胞核內,大小 0.1 至 1.0 μm,是球形、無膜的區室。最初在急性早幼粒細胞白血病(acute promyelocytic leukemia, APL)細胞中被發現,其中染色體易位產生了 PML-RARα 融合腫瘤基因;之後在許多其他類型細胞中都找得到——典型情況是每個細胞核 5 至 30 個,並證實它與許多細胞功能有關。它叫 PML 小體,不是因為 PML 這種疾病,而是因為它標誌性的骨架蛋白 PML:大量 PML 蛋白圍成了 PML 小體的邊界。
PML 蛋白(UniProt P29590)與 PML 小體的發生組裝:PML 又叫 RNF71、TRIM19。RNF 表示環指(RING finger),TRIM 表示它是「三分模體」(tripartite motif)包含蛋白家族成員;RING 其實是「really interesting new gene」的縮寫,是當年發現者取的、可能只是臨時的名字。人類 PML 有 882 個殘基。雖然富集於 PML 小體中,但它的分布其實遍及細胞各部位。
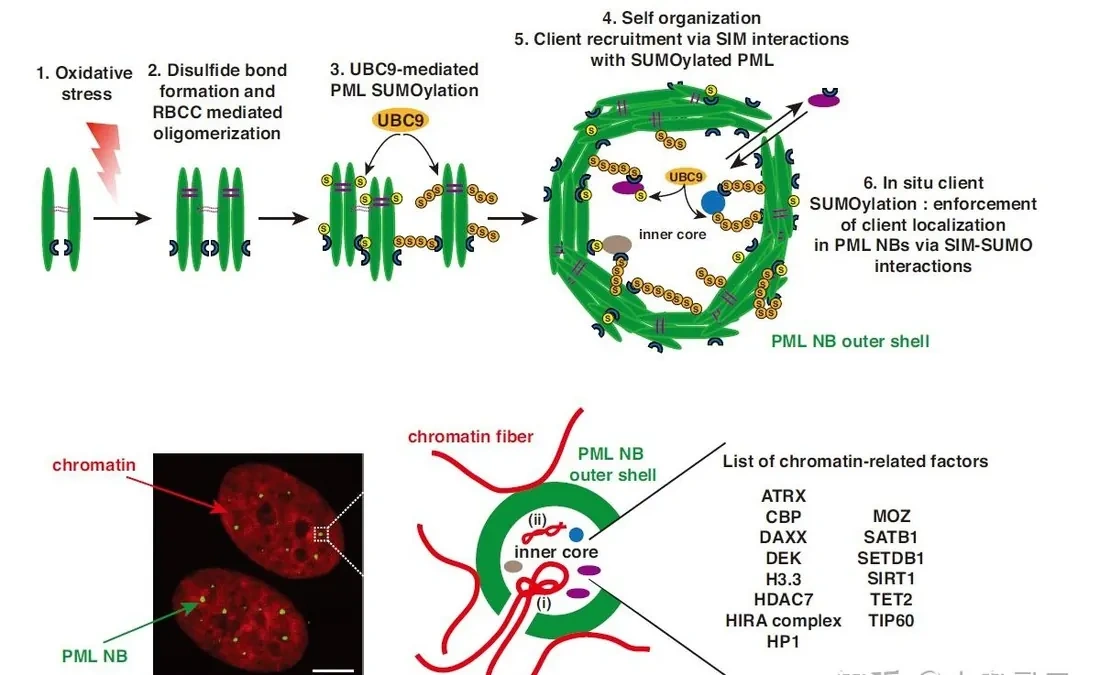
關鍵結構特徵包括:RBCC 模體,也就是上面說的「三分模體」——一個環指結構域(使 PML 成為 E3 SUMO 連接酶)、兩個富含半胱-組胺酸(CH-rich)的 B-box 結構域(可結合 Zn²⁺)、一個捲曲螺旋(α-helical coiled-coil)結構域,縮寫分別是 R、B、CC;核定位訊號(NLS);SUMO 互作模體(SIM),可與 SUMO 及 SUMO 化的蛋白質互作;以及 K65、K160、K490 等多個離胺酸位點被 SUMO 化修飾。
按照相分離的理論,PML 就是個典型的相分離分子。不過 PML 的相分離能力——雖然很重要——不足以單獨解釋:為什麼 PML 形成的是 PML 小體的外殼(outer shell),而不是一顆均勻的 PML 液滴。
通常把 PML 稱作「支架蛋白」(scaffold),把 PML-NBs 內腔中的蛋白稱作「客戶蛋白」(client)。之後有人提出更複雜的 PML-NBs 發生模型(Nature Communications, 2020),涉及 PML 單體之間也能形成分子間二硫鍵,以及最終可能是寡聚化形式、而非 PML 單體,構成了 PML-NBs。
此外,結合在染色質上的 PML 也可能是 PML-NBs 發生的啟動開關:轉錄活躍的區域常常是 PML-NBs 的發生位點,而且剛轉錄出來的 RNA 常常位於 PML-NBs 內。
另外,K65、K160、K490 三個位點的 SUMO 化(分別由 PIAS1、PIAS2 和 RANBP2 介導)對 PML-NBs 的形成至關重要。DNA 損傷、病毒感染(已報導的包括人類巨細胞病毒 HCMV、單純疱疹病毒 HSV、HIV)、砷、細胞壓力、細胞分化事件等因素,都能調節 PML 的 SUMO 化;IFN-α 與 IFN-γ 訊號則可刺激 PML-NBs 形成。特別值得注意的是,砷在白血病中引起 PML-RARα 融合蛋白 SUMO 化與泛素化,進而使其降解——這是某些砷劑治療白血病的藥理機制之一。
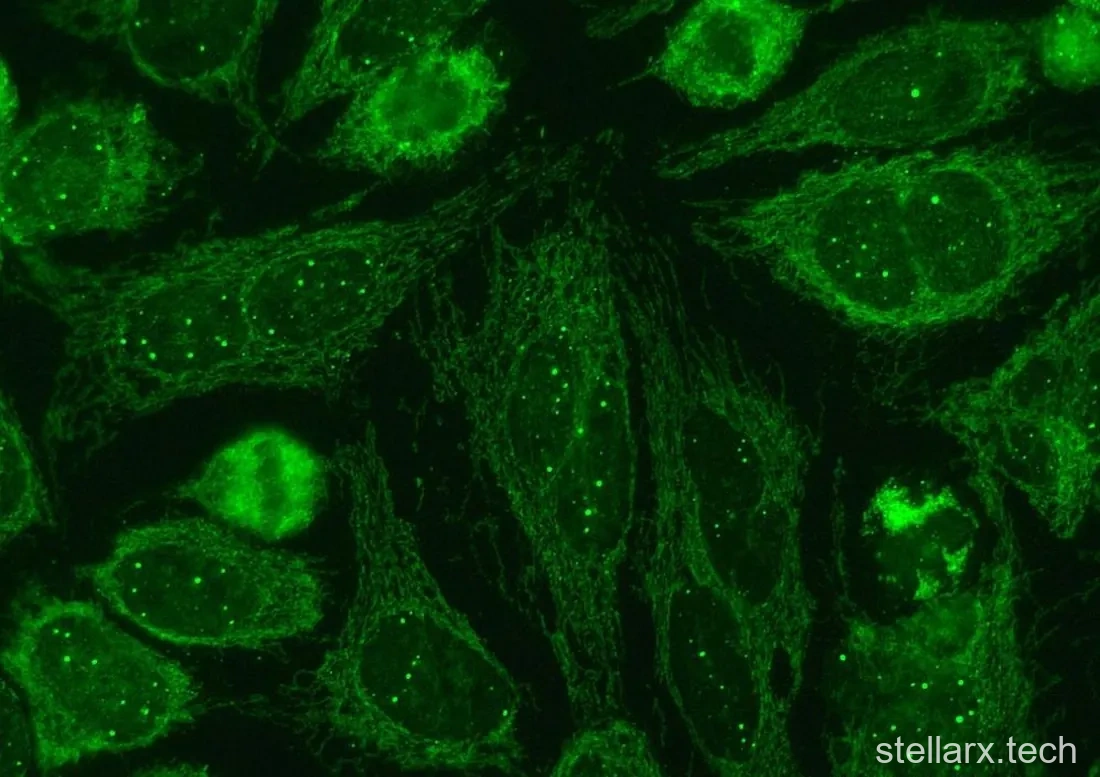
PML-NBs 的內容物龐雜繁多,可透過內容物間接推測其功能,包括:Sp100(第一個鑑定的客戶蛋白)、UBC9(目前唯一已知的 E2 SUMO 連接酶)、組蛋白及其變體(如 H3.3)、組蛋白伴侶(ATRX、DAXX、DEK、HIRA 複合物(含 HIRA、UBN1、CABIN1,有時含 ASF1A))、染色質修飾酶(如 CBP、MOZ/KAT6A、TIP60/KAT5 是轉乙醯基酶,HDAC7 是 IIA 型去乙醯化酶,SETDB1 是 H3K9 三甲基轉移酶,SIRT1 是去乙醯化酶,TET2 是 DNA 去甲基化酶)。
它與染色質動力學、基因表現調控之間的關係自然最令人在意;涉及的特定細胞功能可能包括氧化/損傷壓力、抗病毒免疫、衰老(因發現它與端粒的互作,更發現 lnc-TERRA 是 PML-NBs 的客戶成分)。
總而言之,PML-NBs 發生過程複雜、組分繁多、結構高度動態,堪為典型的細胞器;而它在「細胞器金字塔」中的層次,似乎介於膜性細胞器與典型大蛋白複合物之間。
核旁斑:把 RNA 圍困起來的地方
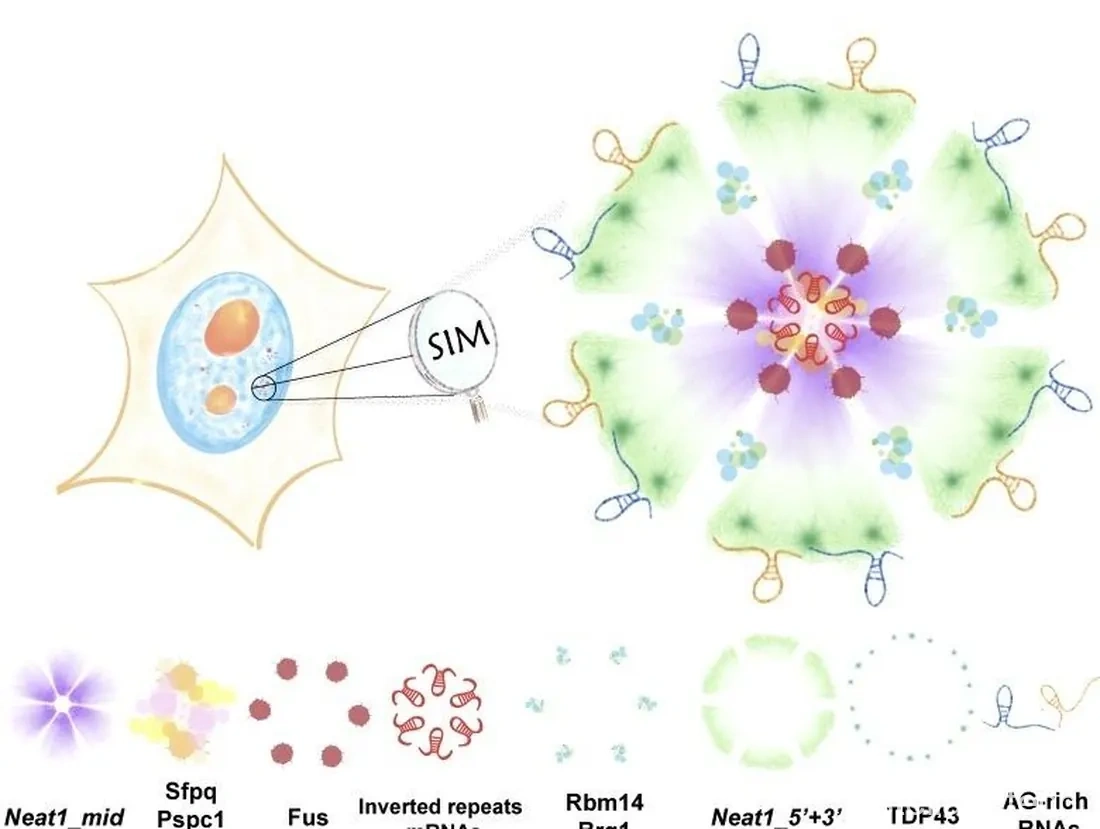
這可能是個真正的冷門細胞器,因為總體上研究得並不多。核旁斑(paraspeckle)含 lnc-NEAT1 與核心蛋白 NONO、SFPQ、PSPC1 等,已鑑定的成分詳表可見維基詞條。它位於許多真核細胞的核內,功能推測是透過液-液相分離(LLPS)機制「圍困」RNA 或蛋白質分子,使其不能發揮功能、不能進入細胞質(核內滯留)或不能進一步加工;此外還與基因表現調節、RNA 剪接有關,但具體機制都有待闡明。
Cajal 小體與剪接體
Cajal 小體以發現該結構的 Santiago Ramón y Cajal(1903)命名,又稱捲曲小體(coiled body),簡稱 CBs。之所以叫「捲曲小體」,是因為早期形態學觀察描述其內部結構就像捲曲的線團(Journal of Ultrastructural Research, 1969);直到 1999 年,才把一批在酵母、哺乳動物與植物中觀察到的相似結構一併命名為 Cajal 小體(Cajal 音「卡哈爾」)。
Cajal 小體的分布範圍很局限,僅見於神經元與增殖或代謝活躍的細胞,如肝臟、胚胎與癌細胞等;就算是這些細胞,也不是每一個都有。大小 0.1 至 2.0 μm,無膜。最初 Cajal 把它記錄為神經元細胞核中嗜銀的核仁附屬顆粒,後來鑑定出捲曲蛋白(coilin/p80)作為 Cajal 小體的標誌物(Journal of Cell Science, 2022),而有功能的捲曲蛋白也是有功能的 CBs 的必要條件。
為了理解 CBs 的功能,得先介紹「剪接體」(spliceosome)。一般讀者很容易熟悉內含子與外顯子,卻對剪接過程一無所知,因為剪接過程實在太複雜了。
剪接體的主體是一系列含核內小 RNA(snRNA)的 RNPs:U1、U2、U5 snRNP 與 U4/U6 di-snRNP(U4 snRNA 與 U6 snRNA 部分互補配對而結合在一起,所以下面提到的 U4/U5/U6 tri-snRNP,更標準的寫法是「U4/U6.U5 tri-snRNP」)。U1、U2、U4、U5、U6 snRNA 被稱為剪接體 snRNA;U3 snRNA 與 rRNA 加工有關,U7 snRNA 與組蛋白 mRNA 3' 端處理有關。
另外,U6 與 U6atac snRNA 由 RNA 聚合酶 III 轉錄,屬於 Lsm 類 snRNA,有 5'-γ-磷酸一甲酯(5′-γ-monomethylphosphate)帽;其特殊之處在於,對應 snRNP 的組裝不依賴 Sm 複合物,而依賴 Lsm 複合物,而且是直接在細胞核內進行,不像其他 snRNP 那樣在細胞質中組裝。其他 snRNA 則屬於 Sm 類 snRNA。之所以用「Ux」標記,是因為它們富含尿嘧啶。其他 snRNA 還有 U11、U12 與 U4atac,它們與 U6atac、U5 一起構成次要剪接體的 snRNA(RNA Biology, 2017)。
參與剪接循環的蛋白數量甚大,超過 100 種,剪接體是真正的巨型分子機器。
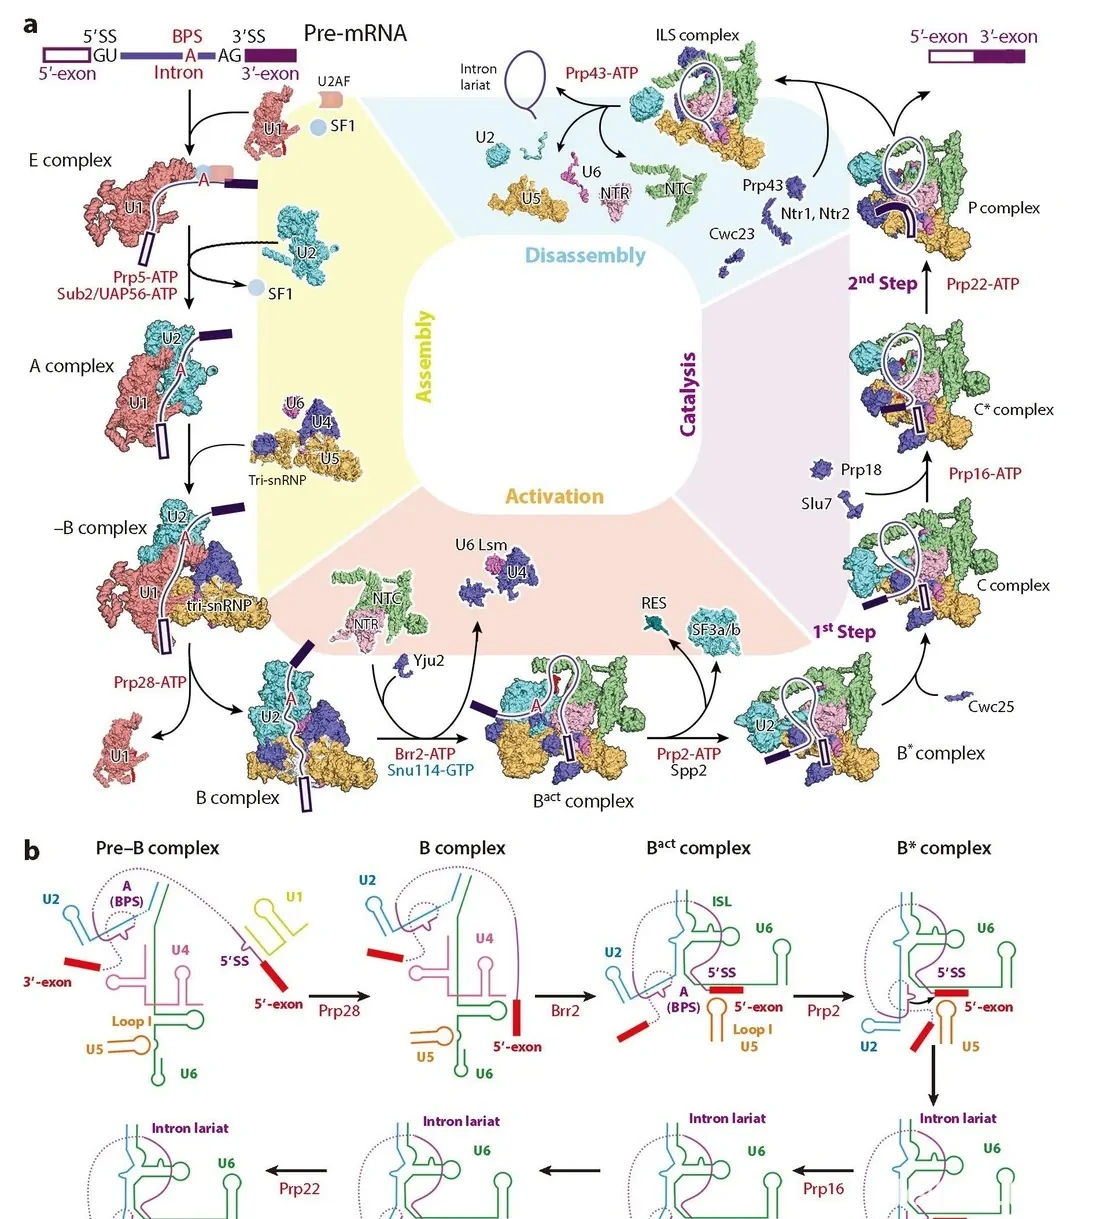
剪接循環大致如下(Annual Review of Biochemistry, 2020)。
剪接訊號的辨識。 U1 snRNP 借助剪接因子 ASF/AS2 辨識並結合 5'-剪接訊號(splicing signal, SS)即 GU,其中 U1 snRNA 與 5'-SS 互補配對。
E-複合物組裝。 U2 輔助因子即 U2AF 複合物(U2AF65/U2AF1 與 U2AF35/U2AF2)辨識並結合 3'-SS 即 AG,剪接因子 SF1 辨識並結合分支點序列(BPS),再加上其他剪接因子,形成 E-複合物(E: early),或稱定向(commitment)複合物。
A 複合物/前剪接體形成。 U2 snRNP 被招募至分支點序列,SF1 被排除離開分支點,此步耗能(Prp5 與 Sub2/UAP56 催化)。此時稱為 A-複合物,也就是「前剪接體」(pre-spliceosome)。U2 snRNP 與 BPS 緊密結合,其中 U2 snRNA 與 BPS 互補配對,但 U2 snRNA 中的一個假尿嘧啶(Ψ)使配對雙鏈處於一種獨特構象,讓 BPS 中一個腺嘌呤(A)殘基的 2'-OH 落在有利於剪接反應發生的位置上。
B-複合物。 U4/U5/U6 tri-snRNP 在 Cajal 小體中組裝,隨後在 Spf30 協助下裝載,第一次形成完整的剪接體(前 B-複合物)。接著在水解 ATP(Prp28)的推動下,各 snRNPs 發生一連串位置重排,U1 snRNP 被 U6 snRNP 排除出原位而解離(耗能),最終 B-複合物形成。
B-複合物/剪接體的活化。 U4 snRNP 解離(耗能,Brr2 催化),使 U6 snRNA 的分子內莖環(ISL)被釋放出來,參與剪接反應活性中心的組成。這個過程招募 20 餘個蛋白,組成十九複合物(nineteen complex, NTC)與 NTC 相關複合物(NTR),有穩定活性中心構象的作用。此後,經過一步耗能反應(Prp2 與 Spp2 催化),把 SF3a 複合物、SF3b 複合物(兩者在 E-複合物形成時被招募,可能與 U2 snRNP 招募和 3' 剪接訊號辨識有關)、RES 複合物與 NTC 的兩個亞基 Cwc24、Cwc27 從剪接體上解離,使 BPS 得以靠近活性中心。剪接體活化完成,稱為 B-複合物。
亞基組成讀起來很折磨人。NTC 複合物的核心組分包括 Prp19/Cwf8、Cef1/Ntc85/Cdc5、Syf1/Ntc90/Cwf3、Syf2/Ntc31、Syf3/Clf1/Ntc77/Cwf4、Snt309/Ntc25/Spf27/Cwf7、Isy1/Ntc30 與 Ntc20,此外還有近 20 個 NTC 相關蛋白——複合物名稱就源自其中一個亞基 Prp19。NTR 複合物的核心組分包括 Prp45、Bud31、Ecm2/Cwf5、Cwc2/Cwf2、Cwc15/Cwf15、Prp46/Cwf1 等(NTC 與 NTR 的組成高度動態,無法列出完整名單)。SF3a 複合物包括 SF3a60、SF3a66 與 SF3a120 等;SF3b 複合物包括 SF3b14、SF3b60、SF3b66、SF3b155、SF3b145 與 SF3b10 等;RES 複合物包括 Bud13、Pml1 與 Snu17 等。